




Содержание
1.1. Пептидная регуляция: ключевые вопросы
В организме человека есть три источника белков:
а) пища;
б) кишечные бактерии;
в) клетки самого организма.
Любая белковая молекула, независимо от ее источника, в итоге расщепляется с помощью ферментов на ряд коротких пептидных фрагментов. Почти все фрагменты являются лишь промежуточными звеньями на пути к дальнейшему расщеплению. Лишь небольшая часть таких фрагментов участвует в регуляторных процессах, взаимодействуя с клетками-мишенями сквозь рецепторы или каким-либо иным способом.
Совокупность вопросов, связанных с пептидной регуляцией, можно свести к четырем ключевым вопросам:
- Каковы механизмы синтеза регуляторных пептидов (рибосомальные и/или нерибосомальные)?
- Какие клетки, ткани и органы продуцируют регуляторные пептиды?
- Как регуляторные пептиды проходят сквозь барьеры (кишечную стенку, клеточную и ядерную мембраны)?
- Каковы механизмы взаимодействия регуляторных пептидов с клетками-мишенями (рецепторные или нерецепторные)?
1.2. Синтез регуляторных пептидов
Размеры пептидных молекул, т. е. количества аминокислотных остатков в пептидных цепочках, определяют существенные различия в способах их проникновения сквозь биологические барьеры (В) и воздействия на клетки-мишени (Г). Ниже будет показано, что порог значительных изменений названных свойств пептидов составляет от четырех до пяти аминокислотных остатков. Поэтому в настоящей работе, в отличие от общепринятой классификации, мы будем обозначать пептиды как короткие (короткоцепочечные пептиды) только в том случае, если они состоят из двух-четырех аминокислот, т. е. если они являются ди-, три- и тетрапептидами. Все остальные пептиды будут рассматриваться как длинные (длинноцепочечные) пептиды.
Рибосомальный синтез белков-предшественников и их расщепление
Белки, синтезируемые в клетках макроорганизма и бактериальных клетках, в соответствии с Центральной догмой молекулярной биологии, т. е. ДНК→ мРНК → (рибосома + тРНК + аминокислоты) → белок, расщепляются ферментами в определенных сайтах протеолиза. Это означает, что пептидные связи разрушаются в определенных мотивах (комбинациях аминокислотных остатков) [10] и в определенном порядке [12].
Этот процесс называется ограниченным протеолизом и состоит из следующих стадий:
- Удаление гидрофобного N-концевого сигнального пептида, который отвечает за перенос молекулы белка, предназначенной для экспорта из полирибосомы, на поверхность грубого эндоплазматического ретикулума.
- Протеолитическое расщепление связей между некоторыми аминокислотными остатками и образование пептидов различного размера.
- Посттрансляционные модификации некоторых аминокислотных остатков в образующихся пептидах (фосфорилирование, ацетилирование и др.)
Классические участки ферментативного расщепления белковой молекулы представлены комбинациями двух положительно заряженных диаминомонокарбоновых кислот [60, 63], т. е. Lys-Arg (KR), Arg-Arg (RK) или Lys-Lys (KK). В различных тканях пропорции расщепления на таких участках варьируют от почти равных долей до значительного преобладания пептидных связей, расщепленных в сторону С-конца от аргинина (Lys-Arg или Arg-Arg) [16, 47, 65]. Иногда расщепление происходит внутри мотива Arg-X-Lys/Arg-Arg (RXK/RR) [47]. Реже расщепляются пептидные связи, включающие только одну основную аминокислоту, Arg или Lys [60]; однако такие случаи важны для образования короткоцепочечных регуляторных пептидов (см. ниже). Участки расщепления могут вообще не содержать аргинина, например, нейротензин расщепляется в мозге не в связях Arg-Arg (RR) и Pro-Arg (PR), но и в связях Pro-Tyr (PY) [44].
Аминокислотный состав эндогенных регуляторных пептидов, как правило, обычно отличается от среднего состава белков. Мы сравнили [30] аминокислотный состав всех белков, включенных в базу данных NIH Protein (http:www.ncbi.nlm.nih.gov/protein), которая квалифицируется как "совокупность последовательностей из нескольких источников, включая трансляции из аннотированных областей кодирования в GenBank, RefSeq и сторонних аннотациях, а также записи из SwissProt, PIR, PRF и PDB”, с аминокислотным составом более чем 150 регуляторных пептидов человека [42, 43] (табл.1). Для этого мы объединили все доступные аминокислотные последовательности в одно “слово", состоящее из 11 млрд. «букв», и рассчитали процентное содержание каждой буквы, например, А (аланин), С (цистеин) и т. д. То же было проделано и с аминокислотными последовательностями 155 регуляторных пептидов.
Таблица 1. Средние аминокислотные составы ( % ) белков, включенных в базу данных NIH Protein, и регуляторных пептидов человека*
| Аминокислота | Все белки | Регуляторные пептиды человека |
| лейцин, L | 9,82 | 9,60 |
| аланин, A | 8,63 | 5,96 |
| глицин, G | 7,05 | 8,77 |
| серин, S | 6,86 | 7,54 |
| валин, V | 6,70 | 4,38 |
| глутаминовая кислота, E | 6,23 | 4,07 |
| изолейцин, I | 5,82 | 3,28 |
| треонин, T | 5,60 | 4,03 |
| аргинин, R | 5,51 | 7,66 |
| аспарагиновая кислота, D | 5,41 | 4,23 |
| лизин, K | 5,29 | 6,28 |
| пролин, P | 4,78 | 6,00 |
| аспарагин, N | 4,12 | 3,24 |
| фенилаланин, F | 3,99 | 5,73 |
| глутамин, Q | 3,94 | 4,78 |
| тирозин, Y | 3,05 | 4,38 |
| метионин, M | 2,39 | 2,41 |
| гистидин, H | 2,21 | 3,00 |
| триптофан, W | 1,30 | 1,94 |
| цистеин, C | 1,30 | 2,72 |
*Расчеты были выполнены д-ром Д.Ю. Кормильцем (Военно-медицинская академия им. С.М. Кирова, Санкт-Петербург).
Обоснованность приведенного выше сравнения ограничена тремя соображениями:
- Сравниваются два образца несопоставимых размеров: сумма аминокислотных остатков в белках в 106 раз больше, чем в регуляторных пептидах.
- Данные по всем белкам разных биологических видов сравниваются с данными по регуляторным пептидам только человека.
- В используемых базах данных недостаточно представлены некоторые важные классы белков, например, мембранные, которые труднее изолировать, чем цитоплазматические белки [38].
Со всеми вышеперечисленными оговорками можно заключить следующее:
- По сравнению с белками, регуляторные пептиды (в данном случае длинноцепочечные) содержат больше аминокислот G, S, R, K, P, F, Q, Y, H, M, W, C и меньше L, A, V, E, T, I, D, N.
- Аминокислоты, наиболее распространенные в белках, наименее распространены в регуляторных пептидах, и наоборот.
Наибольшая разница (1: 2) наблюдается в содержании цистеина (Cys, C), который необходим для образования дисульфидной (S-S) связи, необходимой для стабилизации конформации полипептида.
Причина относительно высокого содержания глицина (Gly, G) в регуляторных пептидах, вероятно, заключается в том, что благодаря своей простой структуре он не препятствует конформационным изменениям и тем самым облегчает формирование соответствующих пространственных конфигураций.
В целом можно сделать вывод о том, что основная масса наиболее распространенных аминокислот в находится в функционально неактивных доменах белков.
Короткоцепочечные регуляторные пептиды, созданные в Санкт-Петербургском институте биорегуляции и геронтологии (пептиды Хавинсона®), содержат только семь из 20 протеиногенных аминокислот, и сравнительные показатели присутствия их в пептидах таковы: E > D > G = K = W > A = R. Наиболее распространенными, согласно этому рейтингу, являются отрицательно заряженные (при рН = 7) глутаминовая кислота (Glu, E) и аспарагиновая кислота (Asp, D).
Нерибосомальный синтез пептидов
Пептидное связывание аминокислот вне рибосом приводит к образованию de novo регуляторных пептидов, в том числе короткоцепочечных, таких как карнозин (Ala-His, AH) и глутатион (Glu-Cys-Gly, ECG) (см. [36, 39]).
Фриц Липманн, лауреат Нобелевской премии по физиологии или медицине за 1953 г., показал, что нерибосомальный ферментативный синтез часто встречается у микроорганизмов, продуцирующих пептидные антибиотики [40]; пептиды нерибосомального происхождения, обнаруженные у животных и человека, могут продуцироваться микроорганизмами, а не клетками макроорганизма. Этот феномен изучен, главным образом, на антимикробных пептидах, полученных из бактерий, попадающих в желудочно-кишечный тракт в составе пищевых продуктов, таких как молоко или мед [9, 10]. Некоторые количества пептидов нерибосомального происхождения могут быть обнаружены в самих пищевых продуктах, и некоторые короткоцепочечные пептиды такого рода могут проникать во внутреннюю среду человеческого организма свозь кишечный барьер (см. ниже).
Характерной особенностью пептидов нерибосомального происхождения является то, что их протеиногенные аминокислоты могут быть гликозилированными, ацилированными, галогенированными или гидроксилированными; они также могут нести N-метильные или N-формильные группы. Кроме того, такие пептиды часто содержат необычные или непротеиногенные аминокислоты (см. [36]) и D-аминокислоты.
Молекулы таких пептидов часто имеют циклическую структуру. Например, почвенные грибы Tolypocladium inflatum синтезируют циклический ундекапептид циклоспорин нерибосомальным способом [7]. Первичная структура циклоспорина А [27] может быть представлена в упрощенном виде следующим образом:
cyclo(Leu-Val-Thr-Abu-Sar-Leu-Val-Leu-Ala-ala-Leu).
Здесь аббревиатуры, обозначающие непротеиногенные аминокислоты, выделены полужирным шрифтом:
Abu = α-аминомасляная кислота (непротеиногенная);
Sar = саркозин (промежуточный и побочный продукт в синтезе глицина);
и ala = D-Ala = D-аланин.
Нерибосомальный синтез создает не только короткоцепочечные пептиды, такие как карнозин и глутатион, но в микроорганизмах он может создавать пептидные молекулы, состоящие из нескольких десятков аминокислот, как это было рассмотрено в нескольких работах (см. [22]).
Неоднократно выдвигалась гипотеза, что нерибосомальный синтез является древним способом производства пептидов, который в ходе эволюции был заменен более прогрессивным рибосомальным синтезом. Возможно, так и было. Однако остается открытым вопрос о том, когда и каким образом появились нерибосомальные пептидные синтетазы (NRPSs), то есть белки, продуцируемые в рибосомах и необходимые для синтеза нерибосомальных пептидов.
Что касается регуляторных пептидов в головном мозге, то глутатион, продукт синтеза нерибосомальных белков, обнаружен связанным с синаптическими мембранами в головном мозге млекопитающих [26, 50] и считается кандидатом на роль нейромедиатора [24]. Однако Мишель Кретьен и его коллеги из Монреальского университета еще в 1970-х годах выдвинули предположение, ставшее впоследствии общепринятым, что все нейропептиды синтезируются в виде белковых молекул-предшественников, которые затем фрагментируются ферментами [10].


1.3. Продуценты регуляторных пептидов
Регуляторные пептиды, происходящие из просвета кишки
Кишечник как источник регуляторных пептидов (рис. 1) имеет второстепенное значение в отношении длинных молекул и, скорее всего, большое значение в отношении короткоцепочечных пептидов. Пептиды появляются в просвете кишки в результате: протеолиза пищевых белков (рис. 1 A) и синтетической активности кишечной микробиоты (рис. 1 C) [2].
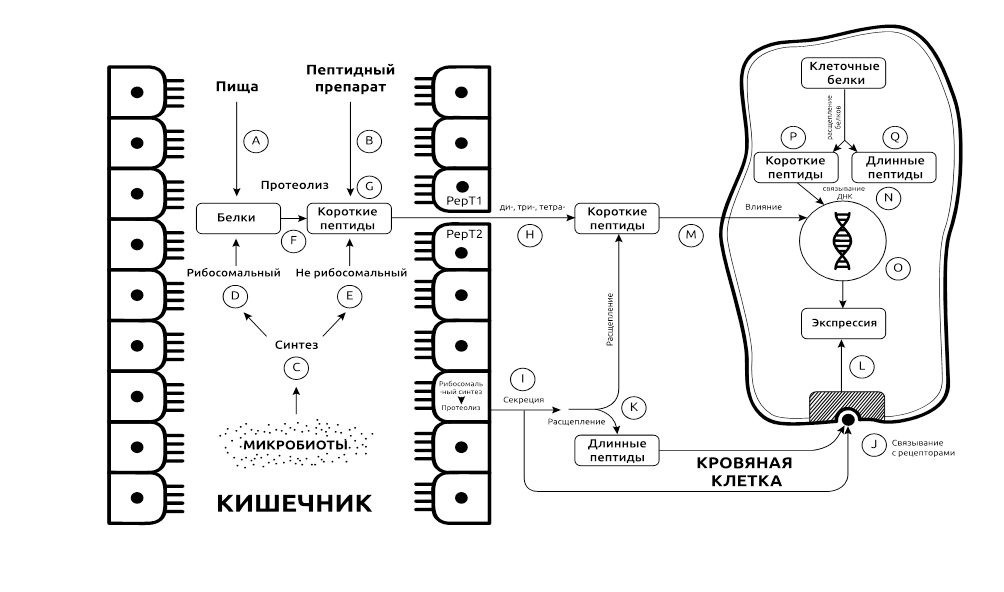
Рис. 1. Система пептидной регуляции: основные элементы.
Белки пищи расщепляются кишечными ферментами до тетра -, три- и дипептидов. Ди-и три— и, в меньшей степени, тетрапептиды всасываются в кровоток. В зависимости от их аминокислотного состава, пептиды более или менее устойчивы к дальнейшему протеолизу. Менее резистентные пептиды, которые количественно преобладают, расщепляются до аминокислот, тогда как более резистентные могут играть роль гуморальных регуляторных факторов.
Микроорганизмы, обитающие в толстой кишке и, в меньших количествах, в тонкой кишке, могут синтезировать: белки в своих рибосомах (рис. 1 D) и пептиды нерибосомальным способом (рис. 1 E). Последние привлекают внимание исследователей преимущественно в контексте влияния патогенных микроорганизмов на биоту кишечника и на состояние организма [59].
Белки, синтезируемые в микробных рибосомах, содержат те же протеиногенные аминокислоты, что и белки, содержащиеся в пищевых белках. Обе группы белков расщепляются (рис. 1 F) тем же арсеналом панкреатических пептидаз. После этого короткоцепочечные пептиды, происходящие как из пищи, так и из микробиоты, можно рассматривать как единый пул (рис. 1 G).
Среди продуктов их пищеварения выделяют короткоцепочечные пептиды, такие как глицил-глицин Gly-Gly, глицил-карнозин Gly-Sar, карнозин β-Ala-His и другие, которые из кишечника могут выходить в кровоток [1].
Регуляторные пептиды, выделяемые непосредственно в кровь
Третий, после пищи и микробиоты, источник регуляторных пептидов составляют эндокринные железы и диффузная нейроэндокринная система, которая представлена в основном эндокринными клетками в слизистой оболочке тонкой кишки [56]. Во всех вышеперечисленных клетках происходят следующие процессы: (а) рибосомальный синтез белков, включая белки — предшественники пептидов; (б) ограниченный протеолиз белков до пептидов, часть которых являются регуляторными; и (в) высвобождение регуляторных пептидов в кровь (рис. 1 I). Некоторые из длинноцепочечных пептидов вскоре связываются со своими рецепторами на поверхности клеток-мишеней (рис. 1 J), тогда как другие расщепляются в крови и интерстициальной жидкости на более мелкие фрагменты (рис. 1 K), которые также связываются со специфическими рецепторами (рис. 1 J).
Связавшись со специфическими рецепторами, пептиды запускают сквозь системы вторичных мессенджеров (рис. 1 L) цепочки биохимических событий, которые в конечном итоге проявляются в виде эффектов на клеточном и тканевом уровнях.
Синтетические аналоги регуляторных пептидов в качестве лекарственных препаратов
Короткоцепочечные регуляторные пептиды могут поступать в организм и в виде синтетических препаратов, принимаемых перорально (per os) в качестве лекарственных средств (см. гл. 5). Это четвертый возможный источник регуляторных пептидов (рис. 1 B).
Независимо от их происхождения короткоцепочечных регуляторных пептидов (из пищевых продуктов, микробиоты, эндокринные клеток или лекарственных препаратов), дальнейшая судьба всех этих молекул имеет общие черты, а потому участие в физиологической регуляции как эндогенных, так и экзогенных пептидов можно рассматривать с общих позиций.
Регуляторные пептиды, продуцируемые самими клетками-мишенями
Теоретически регуляторные пептиды могут образовываться путем расщепления клеточных белков, присутствующих в плазматической мембране, цитоплазме, ядерной оболочке и нуклеоплазме. Например, ниже будет показано, что мотив AEDG (пептиды эпифиза) состоит из белка, связанного с механизмами аутофагии, который присутствует во многих органах человеческого организма, включая ЦНС [41, 57].
Короткоцепочечные пептиды (рис. 1 P), образующиеся в результате протеолиза собственных белков клетки, могут связываться с ДНК (рис. 1 N), тогда как длинноцепочечные пептиды (рис. 1 Q) того же происхождения могут оставить свою клетку-продуцент и связаться с рецепторами (рис. 1 J) на поверхности той же клетки (аутокринный механизм действия). В противном случае они могут связывать соседние клетки (паракринный механизм) или удаленные клетки (эндокринный механизм).
Транспорт регуляторных пептидов сквозь барьеры
Транспорт пептидов сквозь барьеры осуществляется белками bp суперсемейства главных фасилитаторов (major facilitator superfamily — MSF), которое включает подсемейство протонзависимых (или связанных) олигопептидных транспортеров (proton-dependent or proton-coupled oligopeptide transporters — OPTs), способных распознавать и переносить более 8000 различных пептидов [54].
Система поглощения короткоцепочечных пептидов, в том числе тетрапептидов, обнаружена у бактерии Sinorhizobium melitoti [49]. Транспортер тетрапептидов Isp4 обнаружен в делящихся дрожжах Schizosaccharamyces pombe и считается незаменимым для этих клеток [34]. В почкующихся дрожжах Saccharamyces cerevisia описана транспортная система для олигопептидов длиной в 4-5 аминокислот (OligoPeptide Transport — OPT) [67]. PcORT14, ортолог OPT, способен опосредовать поглощение тетрапептида KLGL клетками дрожжей Saccharamyces cerevisia [68]. OPT, специфичные для три-и пентапептидов, обнаружены в грибах и растениях [52]. Наличие таких транспортных систем прослеживается филогенетически от бактерий и грибов до позвоночных [14].
Транспорт пептидов сквозь кишечный барьер
Короткоцепочечные пептиды образуются в результате ограниченного протеолиза белков, как собственных, так и пищевых, которые в небольших количествах переходят из тонкой кишки в кровь [69].
При ферментативном расщеплении пищевых белков существует теоретическая возможность образования короткоживущих фрагментов, структура которых сходна с регуляторными длинноцепочечными пептидами; однако сомнительно, что столь крупные молекулы были способны проникать сквозь кишечный барьер.
Вполне возможно, что кишечный барьер проницаем для циклических пептидов. Например, аргинин-вазопрессин (CYFQNCPRG) частично всасывается и сохраняет свою физиологическую активность при всасывании [48, 61]. В связи с этим возникают два вопроса: много ли циклических длинноцепочечных пептидов в просвете кишки и имеют ли они какое-либо значение для системной гуморальной регуляции?
Как было указано выше, расщепление белков и пептидов в просвете кишки (независимо от того, является ли их происхождение пищевым или микробным) заканчивается на стадии короткоцепочечных пептидов (рис. 1 G), которые способны проникать сквозь кишечный барьер и попадать в интерстициальную жидкость и кровь.
Трипептид Ala-Gly-Gly (AGG) и некоторые дипептиды не гидролизуются в тонкой кишке. Транспортные системы для переноса дипептидов сквозь кишечный барьер не строго специфичны, так как при одновременном введении в просвет кишки двух дипептидов транспорт каждого из них оказывается менее интенсивным, чем при введении одного [1].
Транспортеры пертидов локализуются на щеточных мембранах эпителиальных клеток кишечника [64]. Они переносят ди— и трипептиды сквозь кишечный барьер [5, 64]. Pept1 (рис. 1 H) действует как электрогенный протон- и трипептидный симпортер и переносит любые ди-и трипептиды, но не свободные аминокислоты и не тетрапептиды или еще более крупные молекулы [13, 35]. Однако у птиц было показано, что Pept2 переносит и тетрапептиды [66]
Транспорт пептидов сквозь гематоэнцефалический барьер
Длинноцепочечные регуляторные пептиды, синтезированные вне мозга, оказывают свое действие на центральную нервную систему путем связывания со специфическими рецепторами, локализованными на вагусных афферентах (чувствитель ных волокнах блуждающего нерва) и на внешней поверхности мозга, и лишь в редких случаях благодаря их проникновению сквозь гематоэнцефалический барьер в паренхиму мозга за счет специфической транспортной системы [43]. В то же время короткоцепочечные пептиды, такие как TPPT, могут действовать, попадая в мозг [46]. Например, считается, что тетрапептид Tyr-MIF-1 (YPLG) проникает в мозг путем диффузии сквозь гематоэнцефалический барьер [53]
Транспорт пептидов сквозь клеточные и ядерные мембраны: длинноцепочечные пептиды, проникающие в клетку
У куриных эмбрионов экспрессия мРНК транспортных систем Pept1 и Pept2 обнаруживается не только в тонкой кишке, но и в головном мозге, сердце, легких и почках [72]. Pept2 обнаружен в срезах мозга крыс [25].
Некоторые тетрапептиды способны проходить сквозь клеточные мембраны без участия Pepts (рис. 1 M); например, эта способность показана для синтетического опиоидного тетрапептида [Dmt1]DALDA (Dmt-D-Arg-Phe-Lys-NH2, где Dmt-2',6' — диметилтирозин) [70].
В конце 1980-х годов исследователи, работавшие на медицинском факультете Университета Джона Хопкинса, обнаружили, что белок транс-активатор транскрипции (Tat) вируса иммунодефицита человека (ВИЧ) способен проникать в клетки и влиять на экспрессию генов [19, 21]. Именно тогда было открыто семейство проникающих в клетки пептидов (cell-penetrating peptides — CPPs) [11, 20].
Полагают, что CPPs можно будет использовать в качестве эффективного и нетоксичного средства для доставки в клетки малых интерферирующих РНК (siRNA) [15] — мощного инструмента для модуляции генной экспрессии с помощью РНК-интерференции (RNAi) [58]. Следует подчеркнуть, что CPPs являются не только переносчиками других молеул в клетки извне, но и сами могут быть регуляторными пептидами, то есть могут производить физиологические эффекты, влияя на экспрессию генов.
Большинство CPPs являются длинноцепочечными пептидами, такими как нонапептид R6W3 или октадекапептид PVEC (табл. 2). CPPs широко распространены в вирусах человека. Например, белки оболочки вируса Т-клеточного лейкоза человека и вируса иммунодефицита человека ВИЧ-1 содержат примерно по 200 копий мотива GRKKRRQRRRPPQ, известеного как Tat-пептид.
Таблица 2. Некоторые проникающие в клетку пептидные мотивы [6] и биологические виды, чьи белки содержат такие мотивы [30]
| Происхождение | Пептид | Первичная структура | Кол-во мотивов** |
Похожие статьи
|


Комментарии